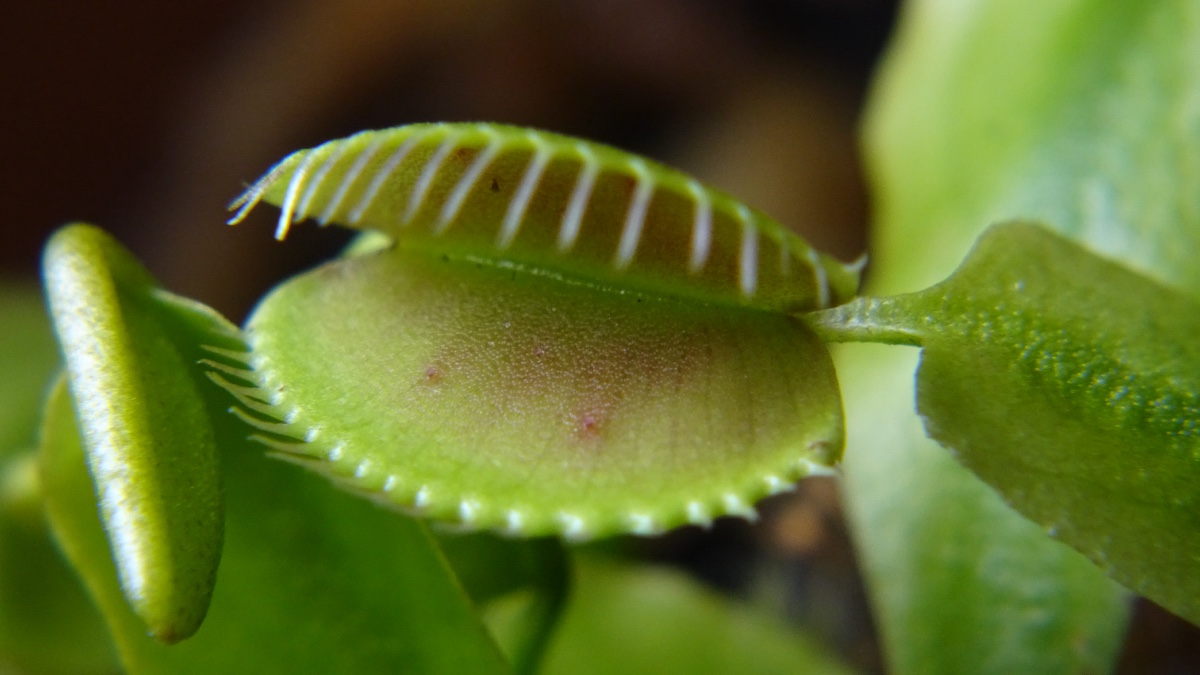
Muchołówka amerykańska (Dionaea muscipula) nie zatrzaskuje pułapki po każdym muśnięciu. W typowych warunkach potrzebuje dwóch impulsów elektrycznych w krótkim odstępie, a późniejsze pobudzenia pomagają uruchomić trawienie. Nie oznacza to jednak prostego liczenia dotknięć: jeden ruch włoska może czasem wywołać więcej niż jeden impuls.
Włosek, który działa jak dźwignia
Włosek czuciowy to smukły stożek o długości około 1,5 milimetra, osadzony na podstawie o wysokości 0,15 milimetra. Między jedną a drugą częścią znajduje się przewężenie, w którym zginanie zamienia się w naprężenie ścinające. W tym miejscu pracuje pojedynczy pierścień zaledwie kilkudziesięciu wyspecjalizowanych komórek mechanoreceptorowych, a sygnał z nich rozchodzi się po całym płacie[1].
Wystarczy odchylenie o 2,9 stopnia i siła rzędu mikroniutonów, żeby powstał impuls. Uciśnięcie tkanki liścia poza włoskiem wymaga siły ponad tysiąc razy większej, aby wywołać podobną reakcję. W małych pułapkach potencjał czynnościowy wyzwala już komar ważący 3 miligramy[1]. Włosek jest więc nie tyle czujnikiem, ile dźwignią, która zbiera siłę z niewielkiego fragmentu powierzchni i przenosi ją na kilkadziesiąt komórek.
Warto od razu rozdzielić dwie rzeczy. Liczone są nie dotknięcia same w sobie, ale impulsy, które z nich powstają. Jeśli bodziec jest za słaby, żeby wywołać potencjał czynnościowy, nie wchodzi do rachunku w ogóle. Mechaniczne muśnięcie i elektryczne pobudzenie to dwa różne etapy tego samego procesu[1].
Drugi impuls musi przyjść w porę
Potencjał czynnościowy w roślinie działa na zasadzie wszystko albo nic: ma mniej więcej stałą amplitudę niezależnie od siły bodźca i rozchodzi się po całym płacie. W doświadczeniach z elektrodami na powierzchni liścia owad musi wywołać dwa impulsy w ciągu 15 do 20 sekund, żeby klapy zamknęły się w ułamku sekundy[2]. Inne pomiary, wykonane w innych warunkach, podają około 30 sekund[3]. Rozbieżność pokazuje, że to wartość przybliżona, zależna od warunków pomiaru, a nie stała fizyczna.
Skąd ten warunek? Pojedyncze pobudzenie może pochodzić od kropli, spadającej gałązki albo innego liścia. Dwa szybkie impulsy z tej samej pułapki są znacznie mniej przypadkowe. Taki układ wygląda na filtr, który odsiewa drobne zdarzenia, zanim roślina uruchomi kosztowny ciąg trawienia. Samo włączenie gruczołów do produkcji i wydzielania enzymów jest dla muchołówki obciążeniem, więc reakcja jest ściśle kontrolowana[2].
Pamięć, która mieści się w kilkudziesięciu sekundach
Za opóźnieniem stoi wapń. Każdy impuls wywołuje falę jonów wapnia, która zaczyna się u podstawy włoska i przechodzi przez płat z prędkością kilkudziesięciu milimetrów na sekundę. To znacznie szybciej niż fala wywołana zranieniem u innych roślin[3]. Po kilkudziesięciu sekundach poziom wapnia wyraźnie spada[3], a po około minucie pierwszy ślad jest już w dużej mierze zatarty[4].
Jeśli drugi impuls przyjdzie, zanim pierwsza fala wygaśnie, oba sygnały się sumują i przekraczają próg uruchamiający zamknięcie. Jeśli przyjdzie później, wapń zdąży opaść, pułapka zostaje otwarta, ale trzeci impuls w krótkim odstępie może jeszcze próg przekroczyć[4]. Widać w tym całą istotę mechanizmu: nie ma tu licznika, który zapisuje zdarzenia w pamięci, jest układ jonów, który przez kilkadziesiąt sekund zachowuje ślad pierwszego dotknięcia, a potem go traci.
Dlatego ostrożniej mówić o liczeniu w cudzysłowie. Roślina nie ma neuronów ani mózgu, nie przechowuje obrazu owada i nie porównuje go z wcześniejszym. Sumuje sygnały i sprawdza, czy przekroczyły wartość progową. To raczej całkowanie sygnału z datą ważności niż arytmetyka[3].
Po zamknięciu licznik pracuje dalej
Zamknięta pułapka nie kończy nasłuchu. Owad w środku szarpie się i dotyka włosków dalej, a ruchy te mogą wyzwalać kolejne impulsy. W pułapce z uwięzioną zdobyczą zarejestrowano ponad sto impulsów w pierwszych dwóch godzinach[5]. Pojedynczy włosek ma jednak granice: pobudzany co 10 sekund wyzwala około dziesięciu impulsów, po czym na pewien czas przestaje odpowiadać i dopiero po przerwie odzyskuje zdolność do pracy[1].
Liczba impulsów przekłada się na kolejne etapy. Już po dwóch pobudzeniach rusza szlak sygnałowy jasmonianów: poziom transkryptu jednego z regulatorów tego szlaku rośnie ponad pięciokrotnie. Powyżej trzech impulsów widać pierwsze oznaki aktywacji genów enzymów trawiących, ale do wyraźnego włączenia potrzeba około pięciu, a im więcej impulsów przybywa, tym silniejsza reakcja. Podobnie od liczby pobudzeń zależy ekspresja kanału DmHKT1, który wpuszcza do pułapki sód z ciała ofiary[2].
Mamy więc trzy różne progi i trzy różne skale czasu. Zamknięcie wymaga dwóch impulsów i ułamka sekundy. Szlak jasmonowy startuje po dwóch, ale rozwija się godzinami. Do fazy wydzielania, z tak zwanym zielonym żołądkiem i kwaśną mieszanką enzymów, dochodzi po kolejnych impulsach, a jej przebieg trwa znacznie dłużej niż sam ruch klap[2]. Ten sam sygnał, ta sama elektryczna jednostka, a skutki zupełnie różne, zależnie od tego, ile ich było.
Niezależne laboratorium: liczy się też chemia
Większość opisanych doświadczeń pochodzi z jednego ośrodka, z Würzburga, więc warto sprawdzić, co widzą inni. Zespół z Bratysławy, niezależny od würzburgskiej grupy i pracujący innymi metodami, drażnił włoski czuciowe zamkniętych pułapek co 10 do 15 minut przez co najmniej trzy godziny, a potem analizował zebraną wydzielinę. Płyn zawierał aktywne enzymy trawienne, w tym cysteinową endopeptydazę dionainę[5].
Ten sam zespół pokazał jednak coś, co komplikuje obraz czystego liczenia. Aktywność proteolityczna była wyższa, gdy pułapkę stymulowano chemicznie solami amonowymi i fosforanowymi, niż gdy drażniono ją samym dotykiem. Kwas jasmonowy i jego połączenie z izoleucyną gromadziły się obficiej po bodźcu chemicznym. Autorzy opisali to jako podwójny mechanizm: najpierw dotyk, potem chemia z rozkładanego ciała. Kiedy owad przestaje się ruszać i impulsy ustają, wydzielanie podtrzymują substancje uwolnione z ofiary[5].
To ważne zastrzeżenie. Liczba dotknięć nie jest jedynym sygnałem, którym roślina się kieruje. Obraz muchołówki jako czystego licznika jest uproszczeniem: impulsy uruchamiają proces, a jego podtrzymanie przejmuje chemia.
Jedno dotknięcie nie zawsze znaczy jeden impuls
Zespół Jana T. Burriego sprawdził ruchy włosków za pomocą precyzyjnego układu mikrorobotycznego. W określonym zakresie prędkości pojedyncze odgięcie włoska wystarczało do wywołania dwóch potencjałów czynnościowych i zatrzaśnięcia pułapki. To podważa prostą regułę „zawsze dwa dotknięcia”, ale pozostaje zgodne z wyzwalaniem reakcji przez dwa impulsy elektryczne [6].
Istotny jest więc nie tylko fakt dotknięcia, lecz także sposób poruszenia włoska. Za słaby lub bardzo powolny ruch może nie dać impulsu, a odpowiednio przebiegające odgięcie może dać ich więcej niż jeden. Roślina reaguje na wynik mechanicznego i elektrycznego procesu, nie na umowną liczbę muśnięć [6].
Dotyk uruchamia proces, ale go nie wyjaśnia w całości
W działaniu pułapki nakłada się kilka mechanizmów: przekształcanie ruchu we włosku, impulsy elektryczne, zmiany stężenia wapnia, sygnalizacja hormonalna i odpowiedź gruczołów. Dwa blisko położone w czasie impulsy mogą wystarczyć do szybkiego ruchu, lecz zamknięcie i trawienie nie są tym samym zdarzeniem. Dalsze pobudzenia oraz substancje pochodzące ze zdobyczy pomagają rozwinąć odpowiedź trawienną [2][5].
Określenie, że muchołówka „liczy”, jest użytecznym skrótem. Nie opisuje jednak matematyki ani ludzkiej pamięci. Za efekt odpowiada układ fizjologiczny, który zachowuje krótkotrwały ślad pobudzenia i reaguje inaczej zależnie od jego nasilenia oraz odstępów między impulsami.
Źródła
- Iosip A. L., Böhm J., Scherzer S., Al-Rasheid K. A. S., Dreyer I., Schultz J. i in., „The Venus flytrap trigger hair–specific potassium channel KDM1 can reestablish the K+ gradient required for hapto-electric signaling”, PLOS Biology 18(12): e3000964, opublikowano 2020. https://doi.org/10.1371/journal.pbio.3000964
- Böhm J., Scherzer S., Krol E., Kreuzer I., von Meyer K., Lorey C. i in., „The Venus Flytrap Dionaea muscipula Counts Prey-Induced Action Potentials to Induce Sodium Uptake”, Current Biology 26(3): 286–295, opublikowano 8 lutego 2016. https://doi.org/10.1016/j.cub.2015.11.057
- Suda H., Mano H., Toyota M., Fukushima K., Mimura T., Tsutsui I. i in., „Calcium dynamics during trap closure visualized in transgenic Venus flytrap”, Nature Plants 6: 1219–1224, opublikowano 5 października 2020. https://doi.org/10.1038/s41477-020-00773-1
- Uniwersytet Juliusza Maksymiliana w Würzburgu, „How the Venus Flytrap Counts”, komunikat Biocentrum, 5 października 2020, aktualizacja 19 stycznia 2026. https://www.uni-wuerzburg.de/en/news-and-events/news/detail/news/how-the-venus-flytrap-counts/
- Libiaková M., Floková K., Novák O., Slováková Ľ., Pavlovič A., „Abundance of Cysteine Endopeptidase Dionain in Digestive Fluid of Venus Flytrap (Dionaea muscipula Ellis) Is Regulated by Different Stimuli from Prey through Jasmonates”, PLOS ONE 9(8): e104424, opublikowano 25 sierpnia 2014. https://doi.org/10.1371/journal.pone.0104424
- Jan T. Burri i in., „A single touch can provide sufficient mechanical stimulation to trigger Venus flytrap closure”, PLOS Biology 18(7), e3000740, 10 lipca 2020. https://journals.plos.org/plosbiology/article?id=10.1371/journal.pbio.3000740
- Ilustracja: Tippitiwichet, „Closeup view of a Venus flytrap”, CC BY 2.0, Wikimedia Commons, plik przeskalowany do 1200×675. https://commons.wikimedia.org/wiki/File:Closeup_view_of_a_Venus_flytrap.jpg