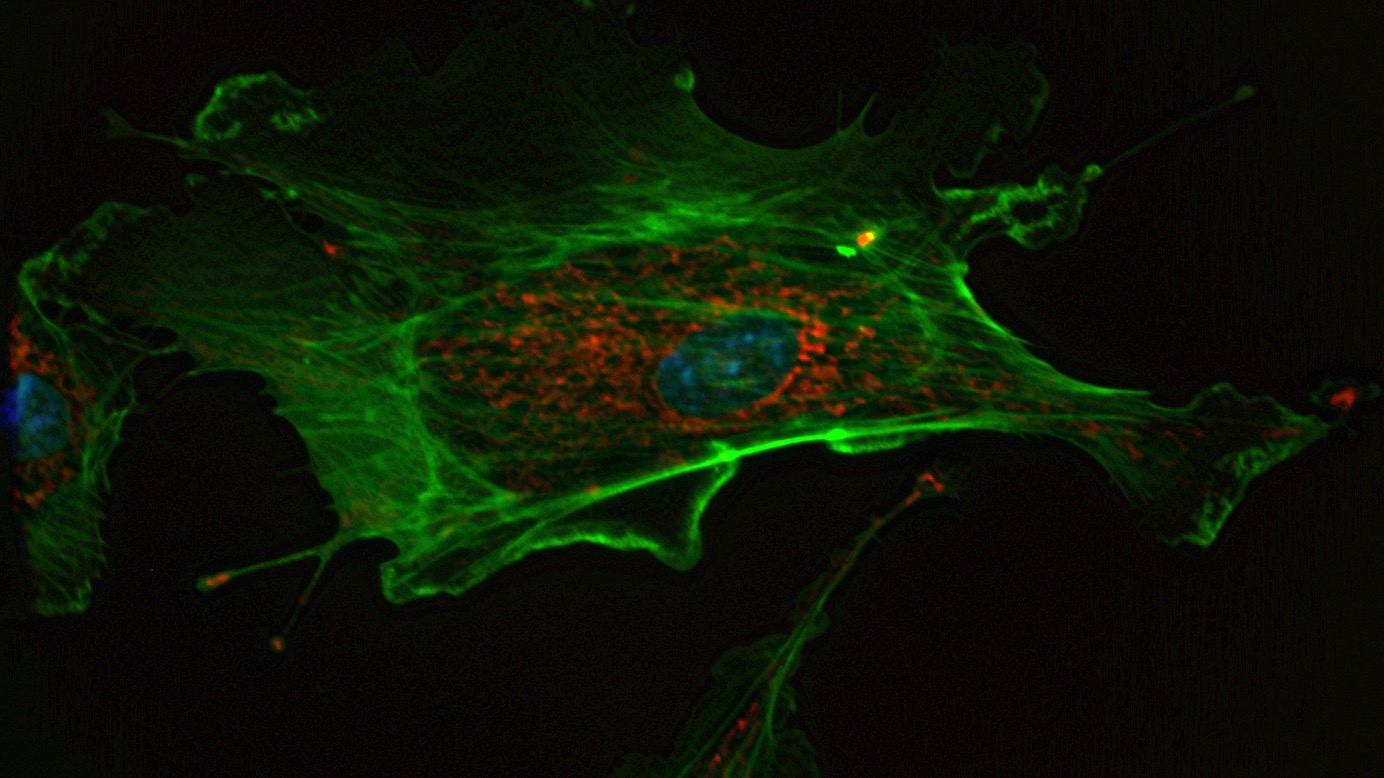
W ludzkiej komórce działa drugi, osobny zestaw instrukcji. Mitochondria, które przetwarzają energię z pokarmu na formę użyteczną dla komórki, mają własne DNA: około 16,5 tysiąca par zasad i 37 genów.[1] Ten zapis nie powstał w naszej linii. Został po bakterii, która u zarania komórek z jądrem zamieszkała w cudzym wnętrzu i już z niego nie wyszła.
Komórka może mieścić od kilkuset do kilku tysięcy mitochondriów, a razem ich DNA to i tak ułamek materiału genetycznego w porównaniu z jądrem. 37 genów to niewiele: 13 koduje białka łańcucha oddechowego, czyli maszynerię wytwarzającą ATP, reszta to geny RNA, drobnych narzędzi potrzebnych do składania białek. Ten mały zapis jest przy tym delikatny. Mitochondrialne DNA słabo się naprawia, więc uszkodzenia od reaktywnych form tlenu kumulują się w nim szybciej niż w chromosomach, a najbardziej odczuwają to tkanki o dużym apetycie na energię: mięśnie, serce, mózg i komórki ucha wewnętrznego.
Bakteria, która zamieszkała w archeonie
Skąd bierze się pewność, że to nie nasz wynalazek? Cała historia zostawiła po sobie zbyt wiele śladów. Mitochondrium ma własny system syntezy białek i genom o bakteryjnym rodowodzie. Współczesne analizy składają to w jeden scenariusz: alfa-proteobakteria weszła do komórki gospodarza spokrewnionej z archeonami z grupy Asgard i została w niej na stałe.[2] Z czasem bakteria straciła większość genów, gospodarz przejął nad nimi kontrolę, a setki nowych genów i system wwożenia białek do wnętrza organelli dokończyły przebudowę.
Skąd wiadomo, że ten genom jest bakteryjny
Najmocniejszy dowód nie leży w kształcie organelli, tylko w sekwencjach. Geny rybosomalnego RNA mitochondriów układają się w drzewo, które prowadzi do bakterii, a nie do archeonów czy jądra komórkowego. W obrębie bakterii trafiają do alfa-proteobakterii; przez lata za najbliższych krewnych uchodziły riketsje i ich powinowaci. Do tego dochodzą ślady, których nie da się podrobić przypadkiem. Mitochondrialny genom pierwotniaka Reclinomonas americana liczy około 69 tysięcy par zasad i zawiera więcej genów niż jakikolwiek inny zbadany. Geny leżą tam w klastrach, tak jak u bakterii, a przed nimi stoją sekwencje startowe, które u bakterii pomagają rybosomowi zacząć tłumaczenie. W literaturze ten genom bywa nazywany eubakteryjnym genomem w miniaturze.[3]
Która bakteria i kiedy
Tu pewność się kończy. W 2018 roku zespół Jorana Martijna dodał do drzewa dwanaście wcześniej nieuwzględnianych linii alfa-proteobakterii i doszedł do wniosku, że mitochondria nie pochodzą od riketsji ani od żadnej innej znanej dziś linii. Ich przodek odłączył się wcześniej niż wszystkie zbadane alfa-proteobakterie.[4] Kiedy doszło do symbiozy, też nie jest przesądzone. Jedna z propozycji, nazwana hipotezą mito-wczesną, twierdzi, że włączenie bakterii było motorem powstania najważniejszych cech komórki eukariotycznej, w tym systemu wwożenia białek do organelli.[5] To propozycja jednego autora, nie ustalony konsensus, więc trzeba traktować ją jako wyjaśnienie, które wciąż jest sprawdzane.
Po co mitochondrium własny DNA
Liczba genów w mitochondrialnym DNA mocno się różni: u zwierząt jest ich trzynaście, u zarodźca malarii tylko trzy, u innych eukariontów nawet kilkadziesiąt. Wspólny mianownik jest taki, że prawie zawsze zostają geny białek łańcucha oddechowego i własnego aparatu tłumaczenia. Dlaczego akurat one nie przeniosły się do jądra? Jedną z odpowiedzi rozwinął John Allen w przeglądzie z 2015 roku. Jego hipoteza koordynacji redoks mówi, że część białek łańcucha oddechowego musi reagować na stan swojej własnej pracy, a taka reakcja wymaga, żeby instrukcja i gotowe białko leżały w tym samym przedziale, blisko źródła sygnału. Przeniesienie genu do jądra zerwałoby tę pętlę.[6]
Autor tej hipotezy sam zaznacza, że da się ją obalić, i wskazuje, jakie eksperymenty mogłyby to zrobić. Konkurencyjne wyjaśnienie odwołuje się do fizyki błon: część białek jest tak hydrofobowa, że ich transport z cytoplazmy do mitochondrium mógłby być zbyt kosztowny albo po prostu niemożliwy. Sprawa nie jest więc zamknięta.
Jest też trzecia możliwość, dotycząca samego procesu przenosin. Kopia genu trafia do jądra dopiero wtedy, gdy mitochondrium pęknie i wypuści swoje DNA. Dla komórki z jednym dużym mitochondrium taka strata byłaby zabójcza, więc przenosiny mogły zachodzić tylko u organizmów, które mają wiele organelli naraz.
Obraz komplikuje fakt, że nie wszystkie eukarionty mają mitochondrialny DNA. Niektóre, na przykład rzęsistek i lamblia, noszą organella bez genomu: hydrogenosomy i mitosomy, resztki mitochondriów, które straciły nie tylko oddychanie tlenowe, ale i własny zapis. Skoro tak, własny genom nie jest warunkiem działania mitochondrium. Jest raczej tym, czego dana linia nie mogła sobie pozwolić stracić.
Z bakterii zostało więc niewiele: kilkadziesiąt genów, własne rybosomy i nawyk regulowania pracy w miejscu, w którym powstaje energia. Reszta przeszła do jądra i wróciła do mitochondrium pod postacią gotowych białek. Ten mały genom jest krótkim spisem tego, czego, jak się wydaje, nie dało się oddać bez utraty kontroli.
Źródła
- MedlinePlus Genetics (NIH, U.S. National Library of Medicine), „Mitochondrial DNA”, strona instytucjonalna, dostęp 27.10.2026. https://medlineplus.gov/genetics/chromosome/mitochondrial-dna/
- Andrew J. Roger, Sergio A. Muñoz-Gómez, Ryoma Kamikawa, „The Origin and Diversification of Mitochondria”, Current Biology 27(21), 2017, odczytany abstrakt. https://doi.org/10.1016/j.cub.2017.09.015
- Michael W. Gray, „Mitochondrial Evolution”, Cold Spring Harbor Perspectives in Biology 4(9), 2012. https://pmc.ncbi.nlm.nih.gov/articles/PMC3428767/
- Joran Martijn, Julian Vosseberg, Lionel Guy, Pierre Offre, Thijs J. G. Ettema, „Deep mitochondrial origin outside the sampled alphaproteobacteria”, Nature 557, 2018, odczytany abstrakt. https://doi.org/10.1038/s41586-018-0059-5
- Jesús E. Bravo-Arévalo, „Tracing the evolutionary pathway: on the origin of mitochondria and eukaryogenesis”, The FEBS Journal, 2025, odczytany abstrakt. https://doi.org/10.1111/febs.70109
- John F. Allen, „Why chloroplasts and mitochondria retain their own genomes and genetic systems: Colocation for redox regulation of gene expression”, PNAS 112(33), 2015. https://pmc.ncbi.nlm.nih.gov/articles/PMC4547249/
- Zdjęcie: IP69.226.103.13 (Wikimedia Commons), „DAPIMitoTrackerRedAlexaFluor488BPAE”, komórki śródbłonka tętnicy płucnej bydlęcej w mikroskopie fluorescencyjnym, licencja CC BY-SA 3.0, kadr zmieniony na 16:9 i ta sama licencja dla kadru. https://commons.wikimedia.org/wiki/File:DAPIMitoTrackerRedAlexaFluor488BPAE.jpg